Chien chanteur de Nouvelle-Guinée · chapitre 10 sur 11
Biologie, reproduction et croissance du Chien chanteur de Nouvelle-Guinée
Une saison par an, un second œstrus en cas d'échec, des pères qui nourrissent les petits : un savoir venu presque tout de la captivité.
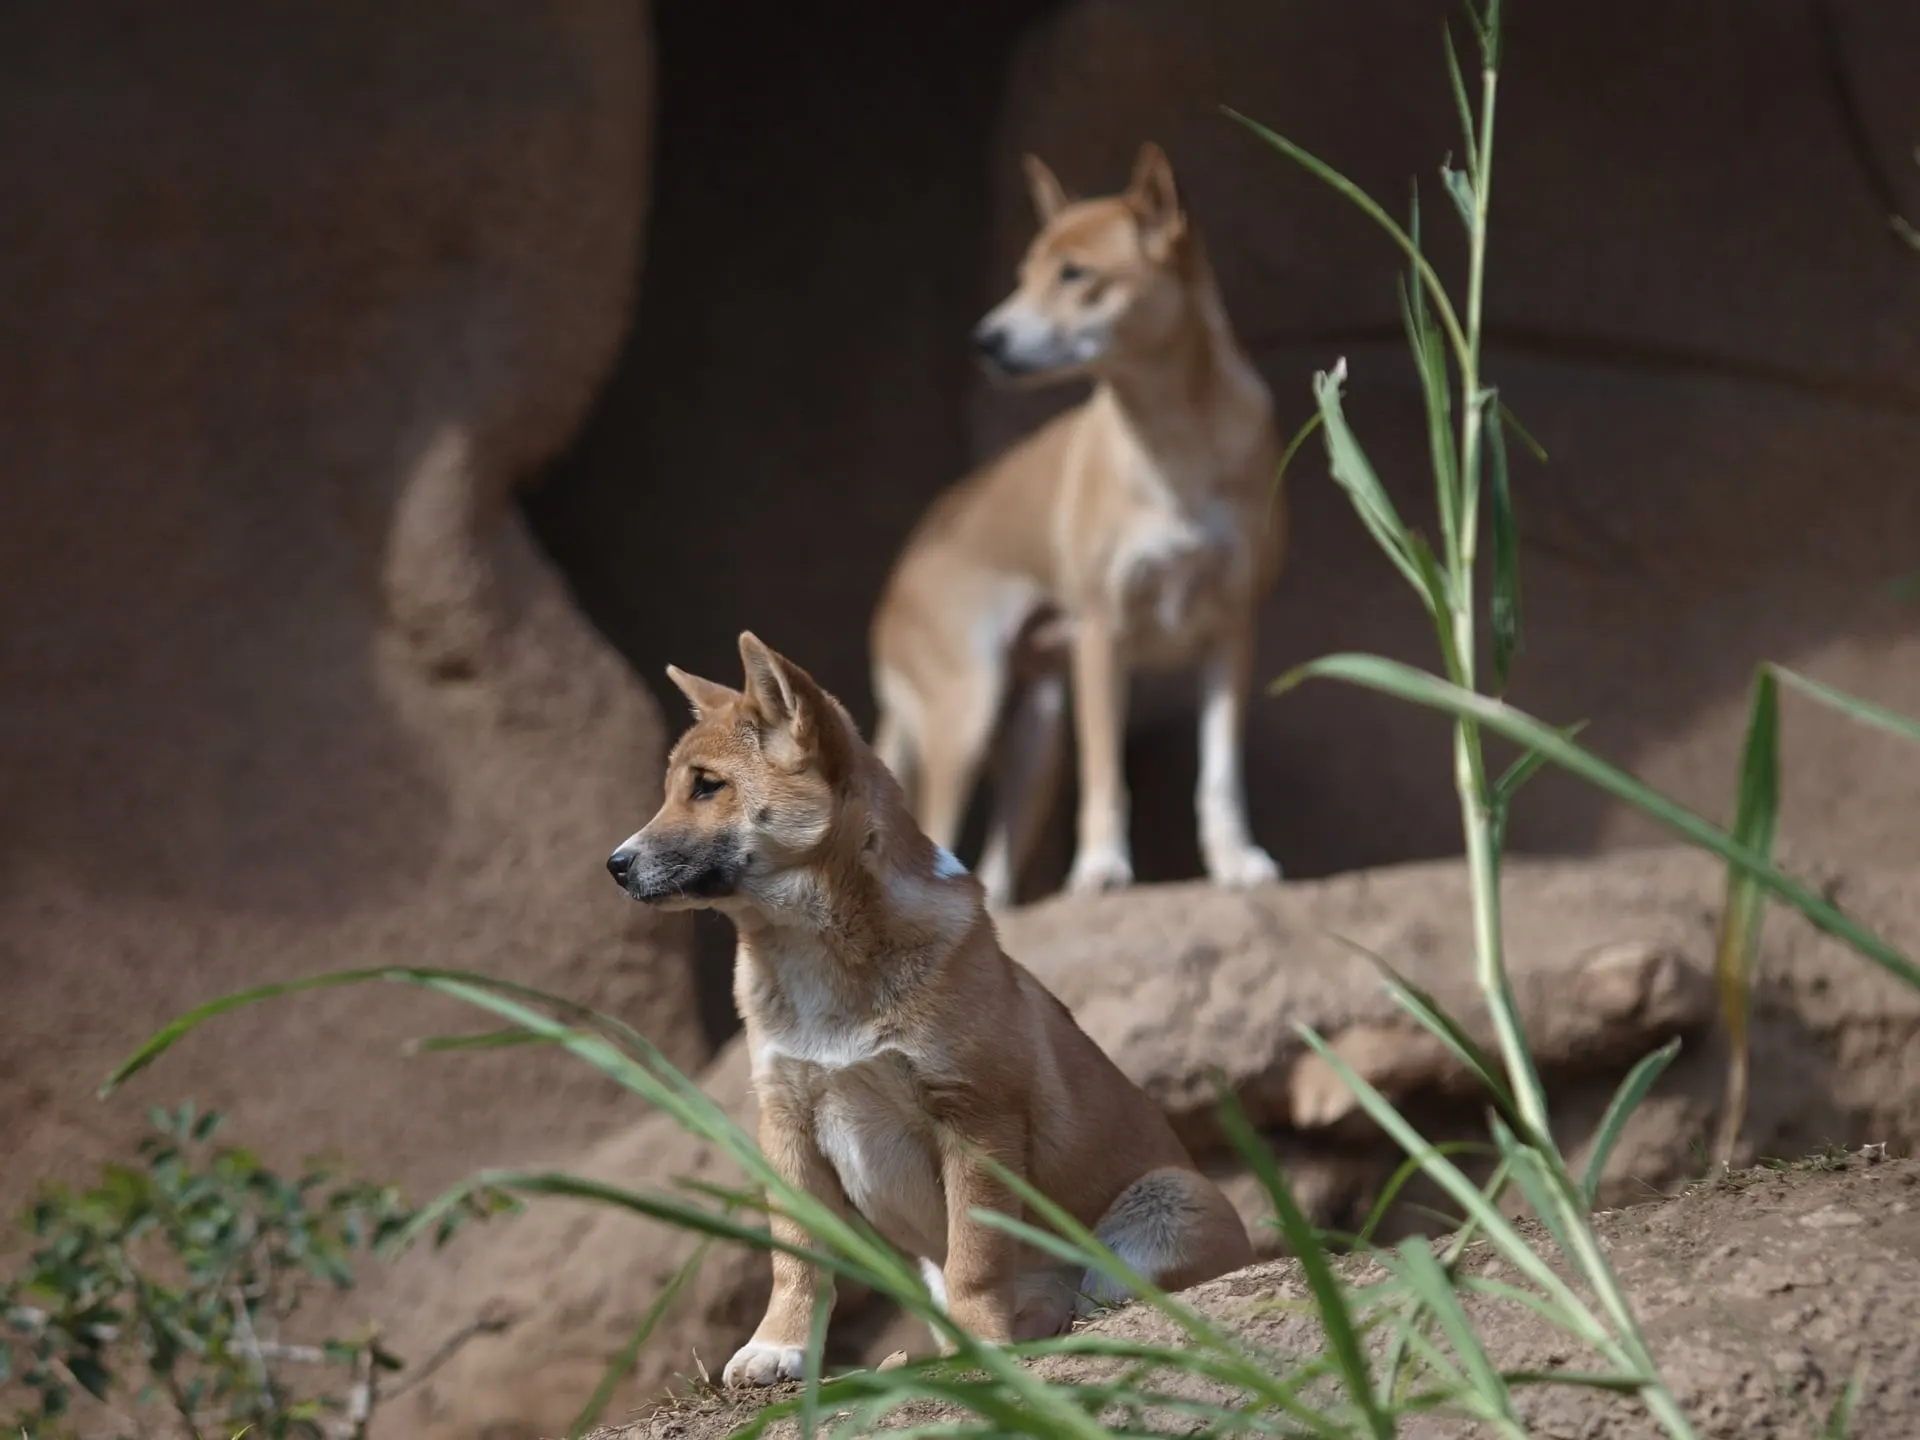
Un adulte veille derrière un jeune, à l'entrée de la tanière. Animaux captifs, zoo de San Diego (États-Unis), décembre 2009.Crédit photo :mliu92 (Flickr)CC BY-SA 2.0 (licence, nouvel onglet)Source de la photo (nouvel onglet)
Sommaire du chapitre12 parties
Le chien chanteur de Nouvelle-Guinée n’est pas une race reconnue par la Fédération cynologique internationale : c’est le chien ancien des hautes terres de Nouvelle-Guinée, connu surtout par une petite population captive issue d’une poignée de fondateurs. Ce chapitre décrit la biologie de sa reproduction et de sa croissance ; il ne donne aucun conseil d’élevage. Une mise en garde s’impose d’emblée : presque tout ce que l’on sait vient de chiens captifs, pour l’essentiel nord-américains, et d’un petit nombre de publications, souvent signées par les mêmes auteurs. La principale est la redescription de l’espèce publiée en 2003 par Janice Koler-Matznick et ses collègues, que nous avons pu lire en entier ; pour les autres travaux, nous n’avons consulté, sauf mention contraire, que les résumés, ou les pages de la société de conservation nord-américaine. Les chiens sauvages des hautes terres, retrouvés en 2016, n’ont encore fait l’objet d’aucune étude de leur reproduction. Lorsqu’une valeur du chien domestique ou du dingo est donnée, elle est signalée comme telle.
D’où viennent les données
La redescription de 2003 repose sur environ 2 000 heures d’observation directe de 81 chiens captifs : 21 animaux de plus d’un an et 60 petits, de la naissance à 19 ans, observés toute l’année dans des enclos extérieurs ou à l’intérieur. Les mesures corporelles portent sur 10 mâles et 9 femelles adultes, les pesées sur 8 mâles et 7 femelles. Les données de reproduction proviennent des dossiers de 25 femelles captives réunis de 1988 à 2000 (Koler-Matznick et al., 2003).
Les autres sources sont plus minces. Un article de 2011 décrit en détail un seul couple captif et sa portée. La société de conservation du chien chanteur (New Guinea Singing Dog Conservation Society, NGSDCS), fondée en Amérique du Nord par la même chercheuse, a publié pendant des années des pages d’information dont nous citons les versions archivées ; ce sont des données de propriétaires et d’éleveurs, non des études. Le zoo de San Diego publie une fiche sans indiquer ses sources. Enfin, des expéditions menées en 2016, 2018 et 2022 dans les hautes terres de Papouasie, en Indonésie, ont photographié et capturé des chiens sauvages, sans publier, à notre connaissance, de mesures de reproduction.
| Source | Ce qu’elle apporte | Effectifs et limites |
|---|---|---|
| Koler-Matznick et al. (2003) | Saison, œstrus répété, gestation, portées, développement des petits, comportements d’accouplement | Chiens captifs nord-américains ; 25 femelles, 20 portées, 81 chiens observés |
| Koler-Matznick et Stinner (2011) | Tanière, soins des deux parents, rejet des jeunes | Un couple captif ; résumé seul consulté |
| Société de conservation (pages archivées, 2008-2013) | Calendrier, maturité, gestion des reproducteurs, fondateurs | Observations d’éleveurs et de propriétaires |
| Zoo de San Diego | Gestation, portée, poids à la naissance, maturité | Fiche sans source ni effectif |
| Expéditions de 2016 à 2022 | Présence de petits et d’une tanière dans la nature | Résumés seuls consultés ; aucune donnée chiffrée de reproduction |
Une seule saison de reproduction par an
Le calendrier en captivité
Comme le dingo et la Basenji, et contrairement à la plupart des chiens domestiques, le chien chanteur captif n’a qu’une saison de reproduction par an. Les sources concordent sur ce point mais divergent un peu sur les dates.
| Source | Début de la saison | Naissances | Périmètre |
|---|---|---|---|
| Koler-Matznick et al. (2003) | Août | Non précisé | Chiens captifs, hémisphère Nord |
| FAQ de la société de conservation (révisée en 2008) | Juillet | Surtout octobre-novembre ; parfois janvier-février après un second œstrus | Chiens captifs, Amérique du Nord |
| Page « Differences » de la société (2012) | Fin de l’été ou automne, quand les jours raccourcissent | — | Chiens captifs ; « au printemps dans l’hémisphère Sud » |
| Nagashima et Songsasen (2021), synthèse | Saison d’août à octobre | — | D’après Koler-Matznick et al. (2003, 2007) |
| Koler-Matznick et al. (2007), texte intégral | Fin septembre | — | Chiens captifs ; dossiers de 25 femelles et suivi hormonal de 8 femelles sur deux ans, non publié (C. Asa et J. Bauman, communication personnelle) |
| Koler-Matznick (2016), chapitre de livre | Août | — | Chiens captifs |
Les naissances d’octobre-novembre annoncées par la société sont cohérentes avec des accouplements en août et une gestation d’environ neuf semaines. La société rattache cette saison au raccourcissement des jours, comme chez la Basenji, dont les chaleurs sont déclenchées par la baisse de la durée du jour (Nagashima et Songsasen, 2021). Chez le chien chanteur, ce lien avec la photopériode est supposé, non démontré : en 2007, Koler-Matznick et ses coauteurs penchent même pour un rythme endogène, la saison ne s’étant pas décalée, selon eux, en une vingtaine de générations passées aux latitudes du Nord. Aucune étude publiée n’a testé l’une ou l’autre hypothèse, et le suivi hormonal qu’ils citent n’a pas été publié.
Un second œstrus si la femelle n’est pas fécondée
C’est la particularité la mieux documentée de l’espèce. Dans les dossiers des 25 femelles captives suivies de 1988 à 2000, environ 65 % des femelles qui n’avaient pas conçu lors de leur premier œstrus annuel ont eu un nouvel œstrus 8 à 16 semaines plus tard. Ces seconds œstrus sont physiologiquement complets : sept gestations sont issues d’accouplements survenus pendant ces cycles de rattrapage (Koler-Matznick et al., 2003). La société de conservation en tire la conséquence pratique : la plupart des petits naissent en octobre-novembre, mais certains en janvier-février.
Deux précisions s’imposent. D’une part, l’intervalle donné en 2003 n’est pas de quelques semaines, mais de deux à quatre mois ; l’article de 2007 parle pourtant d’un second œstrus, et parfois d’un troisième, « quelques semaines » après la fin du premier, et Janice Koler-Matznick écrit en 2016 que 30 % des femelles non fécondées reviennent en chaleur environ trois mois après la fin du premier cycle, et que 10 % de celles-ci en ont un troisième. D’autre part, le chiffre de 65 % porte sur les seules femelles non fécondées, dont le nombre exact n’est pas donné dans l’article. L’article de 2007 range ces cycles « inhabituels » parmi les traits distinctifs de l’espèce (Koler-Matznick et al., 2007), et une synthèse de 2021 sur la reproduction des canidés classe le chien chanteur captif, avec le dhole captif, parmi les canidés polyœstriens saisonniers : la femelle revient en chaleur pendant la saison quand la tentative précédente n’a pas abouti (Nagashima et Songsasen, 2021). Chez la plupart des canidés sauvages, comme chez la chienne, une longue période de repos ovarien suit chaque cycle.
Et dans la nature ?
On ne sait presque rien. Selon des informateurs locaux cités en 2003, des petits sauvages sont aperçus à partir de décembre, ce qui suggérerait un cycle comparable (Koler-Matznick et al., 2003). C’est une indication indirecte, non une observation datée. L’expédition de 2016 dans les hautes terres de Papouasie a photographié des adultes et des petits des deux sexes, ainsi qu’une tanière, sans que le résumé de l’article précise la date des naissances (McIntyre et al., 2020). La Nouvelle-Guinée est proche de l’équateur, où la durée du jour varie peu au fil de l’année : si la saison des chiens captifs de l’hémisphère Nord dépend des jours qui raccourcissent, rien ne dit comment elle se règle dans les montagnes de l’île.
Comparaison avec le chien et le dingo
| Chien chanteur captif | Dingo | Chien domestique | |
|---|---|---|---|
| Saison de reproduction | Une par an ; début en juillet, en août ou fin septembre selon les sources | Une par an, en avril-mai en Australie | Aucune saison ; une ou deux chaleurs par an |
| Second œstrus en cas d’échec | Oui : environ 65 % des femelles non fécondées (2003), 30 % selon Koler-Matznick (2016) | Non mentionné par la synthèse | Sans objet |
| Source | Koler-Matznick et al. (2003, 2007) ; Koler-Matznick (2016) ; Nagashima et Songsasen (2021) | Nagashima et Songsasen (2021), d’après les travaux de Catling | Nagashima et Songsasen (2021) |
La synthèse de 2021 note par ailleurs que, chez le chien domestique, les mâles produisent du sperme toute l’année (Nagashima et Songsasen, 2021). Nous n’avons trouvé aucune étude de la saisonnalité du mâle chien chanteur : ni le volume testiculaire, ni la testostérone, ni la qualité du sperme n’ont été suivis au fil des saisons.
Les chaleurs et l’accouplement
Des rivalités violentes
La saison de reproduction est une période de tensions. Selon la redescription de 2003, quand un partenaire potentiel est présent pendant l’œstrus, les animaux de même sexe se battent souvent jusqu’à se blesser gravement, voire jusqu’à la mort, d’après une observation rapportée par Voth en 1988 (Koler-Matznick et al., 2003). La société de conservation note que les adultes intacts, surtout les mâles, « oublient » leur propreté pendant la saison et marquent à l’intérieur, et que les deux sexes s’agitent fortement, hurlent et marquent lorsqu’ils sont séparés d’un partenaire possible (FAQ, 2008).
Un cri et des contractions propres à l’espèce
Pendant la « soudure » qui unit le mâle et la femelle à la fin de l’accouplement, Koler-Matznick et ses collègues décrivent deux comportements qu’ils n’ont pas trouvés chez les autres membres du genre Canis :
- le cri de copulation : pendant la soudure, la femelle émet une série répétée de cris aigus et puissants, mi-jappements mi-hurlements, pendant environ trois minutes. Ce cri excite fortement la plupart des chiens chanteurs, et des chiens domestiques, qui l’entendent ;
- les contractions de copulation : environ trois minutes après le début de la soudure, la femelle commence une série de contractions abdominales rythmées. À chaque contraction, la peau des flancs et de la région lombaire est tirée vers l’avant ; les contractions s’accompagnent de gémissements, se répètent à quelques secondes d’intervalle, avec des pauses, et durent jusqu’à la fin de la soudure (Koler-Matznick et al., 2003).
Les auteurs comptent sept comportements qui leur paraissent uniques dans le genre, dont ces deux-là. Leur fonction est inconnue : aucune étude n’a cherché à savoir si ces contractions favorisent la fécondation. Ces descriptions viennent de chiens captifs ; on ignore si elles valent pour les chiens sauvages.
Gestation, tanière et mise bas
Une gestation d’environ 63 jours
La redescription de 2003 indique une gestation moyenne de 63 jours chez les femelles captives, sans en préciser l’étendue, l’effectif ni le point de départ du calcul ; la fiche du zoo de San Diego donne la même valeur. Nous n’avons trouvé aucune mesure fondée sur un repère hormonal, aucune fourchette de durées publiée, ni aucune donnée sur des chiennes sauvages.
Une tanière creusée par la mère
La seule description d’une tanière de mise bas vient d’un couple captif observé par Janice Koler-Matznick et Mindy Stinner, publié en 2011 comme la première documentation de ce comportement chez ce chien. La femelle avait creusé sa tanière principale près du sommet d’une butte d’environ 1,5 m : une chambre arrondie d’environ 51 cm de profondeur, avec une entrée d’environ 30 cm de haut et 41 cm de large. À partir de l’âge de deux semaines, la mère déplaçait souvent les petits vers des abris secondaires pour de courtes périodes dans la journée, puis les ramenait à la tanière (Koler-Matznick et Stinner, 2011). C’est une seule portée : on ne peut pas en tirer une règle.
Dans la nature, l’expédition de 2016 a documenté une tanière par pièges photographiques (McIntyre et al., 2020), et une étude ethnoécologique menée autour de Puncak Jaya rapporte que des habitants amungme et moni ménagent pour ces chiens des lieux de mise bas, voire une tanière (Numberi et al., 2022). Aucune mise bas n’a été décrite, ni en liberté ni, en détail, en captivité, et nous n’avons trouvé aucune donnée sur les naissances difficiles ou la mortalité néonatale.
La taille des portées
| Donnée | Valeur | Périmètre et limites |
|---|---|---|
| 20 portées captives | 83 petits, soit un peu plus de 4 par portée en moyenne (calcul de notre part) | Koler-Matznick et al. (2003) ; ni étendue ni médiane publiées |
| Rapport des sexes dans ces portées | 45 mâles pour 38 femelles, sans écart significatif à l’équilibre | Même étude |
| Fiche du zoo de San Diego | « En moyenne 4 » petits | Sans source ni effectif |
| Chiens sauvages | Aucune donnée | Petits photographiés en 2016, sans comptage publié |
Nous n’avons trouvé dans aucune source consultée l’étendue des tailles de portée, ni le nombre de petits sevrés. La société de conservation rapporte enfin qu’une femelle a eu sa dernière portée à 12 ans, d’un mâle de 17 ans, et l’a élevée sans difficulté (FAQ, 2008) : c’est une anecdote, pas une donnée sur la durée de la vie reproductive.
Du nouveau-né à l’adulte
Le calendrier du développement
Les repères qui suivent viennent tous de petits nés en captivité. Ils montrent un développement rapide, en particulier de la denture.
| Étape | Âge | Source et effectif |
|---|---|---|
| Poids à la naissance | 260 g (médiane) | 18 petits de 5 portées (Koler-Matznick et al., 2003) ; même valeur au zoo de San Diego |
| Prise de poids | 50 g par jour en moyenne jusqu’à 4 semaines | Koler-Matznick et al. (2003) |
| Ouverture des yeux et des oreilles | 12 à 14 jours | Même étude |
| Premières prémolaires de lait (notées p³ et p₃ par les auteurs) | Vers 12 et 15 jours | Même étude |
| Premiers mordillements de la nuque entre petits | 2 semaines, contre 6 chez le chien et le loup selon les auteurs | Même étude |
| Déplacements de la portée par la mère | Dès 2 semaines | Un couple captif (Koler-Matznick et Stinner, 2011) |
| Incisives et canines de lait sorties | Vers 21 jours | Koler-Matznick et al. (2003) |
| Régurgitation par les deux parents | De 5 à 12 semaines | Un couple captif (Koler-Matznick et Stinner, 2011) |
| Pelage passé au brun clair | Vers 6 semaines | Koler-Matznick et al. (2003) |
| Environ un tiers du poids adulte | 8 semaines | Même étude |
| Début du pelage adulte | 4 mois | Même étude |
| Menaces des parents envers les jeunes de même sexe | 5 à 6 mois | Un couple captif (Koler-Matznick et Stinner, 2011) |
| Fin de la maturation physique | Vers 4 ans | Koler-Matznick et al. (2003) |
Sur la denture, les auteurs soulignent l’écart avec le chien domestique, dont les carnassières de lait sortent entre 4 et 10 semaines selon la littérature vétérinaire qu’ils citent, et avec le renard roux, à 29 jours. Ils n’ont trouvé aucune donnée comparable pour d’autres canidés. Leur effectif n’est pas précisé pour ces mesures. Nous n’avons trouvé aucune source donnant l’âge du sevrage, ni celui de l’apparition des premières vocalisations ou du premier hurlement.
Un pelage de petit très différent de celui de l’adulte
À la naissance, le pelage est chocolat foncé, piqueté d’or et teinté de roux ; il s’éclaircit en brun clair vers six semaines, et le pelage adulte commence à apparaître vers quatre mois (Koler-Matznick et al., 2003). Un petit sombre ne préjuge donc pas de la robe adulte.
Des comportements précoces
Selon la redescription de 2003, les chiens chanteurs montrent l’essentiel des comportements décrits chez les autres Canis, mais souvent avec un seuil de déclenchement plus bas et plus tôt dans la vie : les mordillements de la nuque apparaissent à deux semaines, contre six chez le chien et le loup. Les auteurs n’ont jamais vu leurs chiens faire la révérence d’invitation au jeu, pourtant universelle chez les canidés (Koler-Matznick et al., 2003). Le chapitre consacré au caractère développe ces différences.
Les parents et les jeunes
Deux parents nourriciers
Les observations de captivité décrivent des soins biparentaux. En 2003, Koler-Matznick et ses collègues notent que les mâles gardés avec leur compagne et leurs petits leur apportent souvent des soins, régurgitation de nourriture comprise, et que la mère défend vigoureusement sa portée contre un mâle qu’elle juge dangereux. Chez le couple suivi en 2011, le père et la mère ont tous deux régulièrement régurgité pour les petits âgés de 5 à 12 semaines (Koler-Matznick et Stinner, 2011). Le zoo de San Diego résume : les deux parents élèvent les petits, le père jouant d’ordinaire le rôle de celui qui les remet à leur place.
Le rejet des jeunes à la saison suivante
L’élevage en famille a une limite. Au cours de leur première saison de reproduction, surtout si un partenaire potentiel est présent, les jeunes sont souvent attaqués avec violence par le parent de même sexe (Koler-Matznick et al., 2003). Chez le couple de 2011, le père a commencé à menacer de plus en plus son fils à partir de cinq mois, et la mère ses filles vers six mois ; selon les auteurs, ce rejet des jeunes de même sexe est habituel chez les chiens chanteurs captifs à l’approche de la saison suivante (Koler-Matznick et Stinner, 2011).
Les auteurs en déduisent que les chiens chanteurs sauvages ne formeraient pas de meutes permanentes et vivraient en couples ou en petits groupes familiaux dispersés ; les observations sauvages de l’époque ne portaient que sur des animaux seuls ou en couple (Koler-Matznick et al., 2003). C’est une inférence tirée de la captivité. Dans les hautes terres de Papouasie, des habitants interrogés et des pièges photographiques décrivent des groupes de 3 à 5 animaux (Numberi et al., 2022) ; autour de la mine de Grasberg, les expéditions de 2016 à 2022 ont observé des chiens seuls, des couples et des groupes de trois à huit chiens (McIntyre et al., 2025). Ni la composition de ces groupes ni le nombre de femelles qui s’y reproduisent ne sont connus, et rien n’autorise à leur prêter l’organisation en meutes du dingo.
La maturité sexuelle
Les sources sont pauvres et peu cohérentes.
| Source | Donnée | Remarque |
|---|---|---|
| FAQ de la société de conservation (2008) | Maturité sexuelle entre 6 et 9 mois | Indiquée en passant, à propos de la stérilisation ; sans étude |
| Koler-Matznick et al. (2003) | Maturation physique achevée vers 4 ans | Croissance, et non puberté |
| Zoo de San Diego | « Âge de la maturité : 4 ans » | Sans précision ; sans doute la maturité physique |
Nous n’avons trouvé ni âge à la première portée, ni âge à la première saillie mesurés sur un effectif. Que la puberté survienne entre 6 et 9 mois paraît compatible avec une saison annuelle : un petit né en octobre aurait 9 à 10 mois à la saison suivante. Mais c’est une déduction, non une observation publiée.
La génétique d’une population captive
Une poignée de fondateurs
Toute la population captive descend d’un très petit nombre de chiens, dont l’histoire est retracée au chapitre consacré à l’histoire. Koler-Matznick et ses coauteurs (2007), l’étude génomique de 2020 et la société de conservation parlent de huit fondateurs, que l’étude de 2020 dit « en partie apparentés » (Surbakti et al., 2020) : le couple de 1956, les cinq chiens de l’Eipomek et une femelle dite sauvage du sanctuaire de Baiyer River. Nous n’avons trouvé aucune étude de pedigree publiée qui vérifie ce décompte.
| Lignée | Origine | Rôle dans la population |
|---|---|---|
| Couple de Taronga | Vallée de Lavani, hautes terres du sud de la Papouasie-Nouvelle-Guinée ; arrivé au zoo de Sydney en 1956 | Ancêtres de presque tous les chiens nord-américains |
| Lignée de l’Eipomek, dite « d’Irian Jaya » | Cinq chiens rapportés en 1976 par une expédition allemande, confiés à l’institut des animaux domestiques de Kiel | Une femelle de cette lignée, arrivée au zoo de Wichita en 1987, a eu plusieurs portées avec un mâle de lignée Taronga |
| Mâle de Baiyer River | Né en captivité en 1981 au sanctuaire de Baiyer River (Papouasie-Nouvelle-Guinée), d’un mâle de lignée papoue et d’une femelle capturée sauvage, que l’article de 2007 compte comme huitième fondateur | Importé au Canada en 1987 selon la société, puis reproduit en 1994 à un âge avancé |
Sources : Koler-Matznick et al. (2003, 2007) ; société de conservation, page « History » archivée en 2013.
La redescription de 2003 précise que tous les chiens vivants qu’elle étudiait étaient issus de croisements entre la lignée papoue (Taronga) et celle de l’Eipomek, et qu’environ un tiers d’entre eux comptaient en outre le mâle de Baiyer River parmi leurs parents ou grands-parents. Elle rappelle aussi que les traits jugés propres à l’espèce sont présents chez 100 % des chiens captifs, ce qui pourrait, en théorie, résulter d’un effet fondateur ou d’une dérive génétique ; les auteurs jugent toutefois cette hypothèse peu probable, les fondateurs venant de deux régions éloignées, plus un fondateur isolé d’une troisième région, et l’élevage n’ayant pas été sélectif (Koler-Matznick et al., 2003).
Des fondateurs vraiment sauvages ?
Le statut des fondateurs est contesté. En 2021, les anthropologues Peter Dwyer et Monica Minnegal ont réexaminé les archives et conclu que peu de fondateurs de la population captive, voire aucun, étaient des chiens sauvages ou leurs descendants récents ; selon eux, ils provenaient plus probablement des chiens de village, qui ressemblaient alors aux chiens chanteurs (Dwyer et Minnegal, 2021a et 2021b). Les auteurs de l’étude génomique de 2020 leur ont répondu que leurs données séparent nettement les chiens sauvages des hautes terres des chiens de village actuels, très métissés de chiens introduits après la colonisation (Cairns et al., 2021). Pour la reproduction, ce débat change peu : quelle que soit leur origine, les fondateurs étaient très peu nombreux.
Une consanguinité élevée
| Étude | Échantillon | Résultat |
|---|---|---|
| Koler-Matznick et al. (2003) | Population reproductrice captive | Environ 50 reproducteurs, décrits comme « très consanguins » |
| Cairns et al. (2018) | 5 chiens chanteurs captifs nord-américains ; 58 512 SNP | Coefficient de consanguinité individuel de 0,457 à 0,671 |
| Surbakti et al. (2020) | 16 chiens chanteurs captifs, 3 chiens sauvages des hautes terres ; puce SNP canine | Hétérozygotie significativement plus élevée chez les chiens sauvages que chez les captifs |
Le chiffre de « plus de 0,50 » souvent repris vient de l’étude de 2020, qui cite celle de 2018. Il faut le lire avec ses réserves : cinq chiens seulement, et une puce conçue à partir de races européennes, qui peut gonfler artificiellement l’homozygotie des canidés éloignés de ces races ; les auteurs de 2018 le reconnaissent eux-mêmes et recommandent d’autres études (Cairns et al., 2018). Les deux équipes concluent néanmoins à une consanguinité très forte, cohérente avec les pedigrees. L’étude de 2020 prévient que chaque nouvelle génération captive accroît le risque que des variants délétères se fixent (Surbakti et al., 2020).
Combien de chiens captifs ?
| Date de l’estimation | Effectif | Source |
|---|---|---|
| 1995 | Environ 300 chiens captifs | Société de conservation, page « History » |
| 2003 | Environ 50 reproducteurs | Koler-Matznick et al. (2003) |
| 2008 | Moins de 100 reproducteurs dans le monde ; 2 ou 3 portées documentées par an | FAQ de la société de conservation |
| 2016 | Moins de 300 chiens captifs | Société de conservation, page « History » archivée en 2022 |
| 2020 | Pas plus de 200 à 300 chiens captifs vivants | Surbakti et al. (2020) |
| Non daté (consulté en 2026) | 300 à 500 chiens chez des particuliers en Amérique du Nord, chiffre que la société qualifie de spéculatif | Société de conservation |
Ces chiffres ne mesurent pas la même chose : population totale, reproducteurs ou seule Amérique du Nord. Aucun recensement récent n’existe, d’autant que beaucoup de chiens vivent chez des particuliers.
Une gestion des reproducteurs par une association
Nous n’avons trouvé aucun programme d’élevage géré par une association de zoos, ni en Amérique du Nord ni en Europe. Selon ses pages archivées, la société de conservation tient un livre généalogique (stud book), commencé à partir de l’ancien compte du biologiste I. Lehr Brisbin dans le système d’information des zoos (ISIS), et l’a ouvert après examen à des chiens sans pedigree, dont beaucoup venaient de marchands d’animaux exotiques qui ne tenaient aucun registre. Pour éviter que la descendance d’un seul couple ne submerge une population aussi réduite, elle recommandait qu’un couple ne fournisse que deux ou trois descendants reproducteurs au cours de sa vie, et que la plupart des petits soient placés avec un engagement de stérilisation (FAQ, 2008).
La même société rapportait l’apparition d’une monorchidie (un seul testicule descendu) dans la population nord-américaine, et une diminution de ce défaut, avec une « vigueur hybride », chez les descendants du croisement entre la lignée de l’Eipomek et la lignée Taronga (page « History », 2013). C’est un témoignage d’éleveurs, non une étude : aucune fréquence n’a été publiée. Le chapitre consacré à la santé revient sur ce point.
Les chiens sauvages des hautes terres, un réservoir génétique
En 2016, une expédition de la New Guinea Highland Wild Dog Foundation, menée près de la mine de Grasberg, au pied du Puncak Jaya, a signalé quinze chiens sauvages. En 2018, sur une nouvelle mission, 18 chiens ont été observés, dont 10 nouveaux ; deux ont été capturés, examinés et équipés de colliers GPS, et un troisième, mort, a été prélevé (Surbakti et al., 2020). La synthèse publiée en 2025 couvre trois expéditions (2016, 2018 et 2022), huit chiens capturés et quatre colliers GPS (McIntyre et al., 2025). Une étude ethnoécologique estime la population locale à environ 200 animaux (Numberi et al., 2022), une estimation dont la méthode n’est pas détaillée dans le résumé.
L’analyse génomique des trois chiens de 2018 a montré qu’ils forment, avec les chiens chanteurs captifs et les dingos, une même branche océanienne, et qu’ils sont les plus proches parents connus des chiens chanteurs captifs. Surtout, leur hétérozygotie est significativement plus élevée que celle des captifs. Les auteurs proposent donc d’associer chiens sauvages et chiens captifs dans les efforts de conservation, en rappelant qu’un petit nombre d’individus issus d’une population naturelle peut suffire à relever la diversité d’une population captive (Surbakti et al., 2020).
Trois limites sont à garder en tête. L’étude repose sur trois animaux. Environ 28 à 30 % de leur génome ressemble davantage aux chiens de race qu’aux chiens océaniens, ce que les auteurs interprètent comme un apport limité, venu d’une population ancestrale des races modernes, sans exclure qu’il s’agisse en partie d’une variation ancienne que la population captive aurait perdue. Enfin, il s’agit d’une proposition : nous n’avons trouvé aucune trace d’un programme de reproduction associant chiens sauvages et chiens captifs.
L’hybridation avec le chien domestique
Le chien chanteur et le chien domestique peuvent se reproduire entre eux ; dès 2003, Koler-Matznick et ses collègues rappelaient que la possibilité d’hybrides féconds ne dit rien du statut taxonomique, puisque toutes les espèces du genre Canis en produisent. En 2007, les mêmes auteurs présentaient le croisement avec les chiens importés en nombre croissant en Nouvelle-Guinée comme une menace pour les chiens sauvages (Koler-Matznick et al., 2007).
Les données restent indirectes. Les chiens de village de Nouvelle-Guinée analysés en 2020 tenaient environ 87 % de leur génome des chiens de race et 13 % seulement des chiens océaniens, signe d’abondants croisements avec des chiens introduits (Surbakti et al., 2020) ; Dwyer et Minnegal objectent que ces chiens venaient de lieux en contact avec des races importées depuis 70 à 120 ans et ne représentent pas les chiens de village d’avant la colonisation (Dwyer et Minnegal, 2021a). En captivité, aucune étude génétique n’a mesuré la proportion d’hybrides ; la société de conservation signalait seulement l’existence de chiens sans origine connue, produits par des marchands. Aucune donnée ne décrit la reproduction ou la fertilité des hybrides : on ignore, par exemple, s’ils conservent la saison unique du chien chanteur.
Ce que l’on ignore
Le bilan est court. On sait que le chien chanteur captif se reproduit une fois par an, avec un second œstrus fréquent en cas d’échec ; que sa gestation dure environ 63 jours ; que ses portées comptent environ quatre petits ; que ses petits se développent vite et que les deux parents les nourrissent ; et que la population captive est très consanguine. Le reste manque :
- aucune donnée de reproduction mesurée sur des chiens sauvages : ni saison, ni taille de portée, ni survie des jeunes, ni âge de la première reproduction ;
- aucun profil hormonal du cycle de la femelle, aucune étude de la saisonnalité du mâle ;
- aucune description publiée d’une mise bas, ni donnée sur la mortalité néonatale ;
- aucun âge de sevrage ni de premières vocalisations ;
- aucune mesure récente et complète de la consanguinité de la population captive, ni de la fréquence de la monorchidie.
Les expéditions en cours dans les hautes terres de Papouasie sont, pour l’heure, la seule source possible de réponses sur la biologie du chien chanteur en liberté.
Questions fréquentes
Combien de fois par an la femelle du chien chanteur a-t-elle ses chaleurs ?
En captivité, une seule saison par an, à la fin de l'été ou en automne dans l'hémisphère Nord. Si elle n'est pas fécondée, la femelle peut toutefois revenir en chaleur 8 à 16 semaines plus tard : c'était le cas d'environ 65 % des femelles concernées dans les dossiers de 25 femelles captives réunis de 1988 à 2000. On ignore si les femelles sauvages se comportent de même.
Combien de petits compte une portée ?
La redescription de 2003 rapporte 83 petits nés dans 20 portées captives, soit un peu plus de 4 en moyenne ; le zoo de San Diego indique lui aussi une moyenne de 4. Nous n'avons trouvé aucune fourchette publiée ni aucune donnée sur les portées de chiens sauvages.
Combien de temps dure la gestation ?
En moyenne 63 jours chez les femelles captives, selon la redescription de 2003 et le zoo de San Diego. Ni l'effectif, ni la méthode de calcul, ni l'étendue des durées ne sont précisés dans les sources consultées. Aucune durée n'a été mesurée chez des chiennes sauvages.
Le mâle s'occupe-t-il des petits ?
En captivité, souvent. La redescription de 2003 note que les mâles gardés avec leur compagne et leurs petits participent aux soins, régurgitation de nourriture comprise. Chez un couple captif observé en détail, les deux parents ont régurgité pour les petits de 5 à 12 semaines. À l'approche de la saison suivante, chaque parent tend en revanche à rejeter les jeunes de son sexe.
Pourquoi dit-on que les chiens chanteurs captifs sont très consanguins ?
Parce que toute la population captive, quelques centaines d'animaux au plus, descend d'environ huit fondateurs en partie apparentés. Sur 5 chiens captifs génotypés en 2018, le coefficient de consanguinité estimé allait de 0,46 à 0,67, avec des réserves sur la méthode. Les trois chiens sauvages des hautes terres analysés en 2020 étaient nettement plus hétérozygotes.
Les chiens sauvages des hautes terres pourraient-ils sauver la population captive ?
C'est la proposition des auteurs de l'étude génomique de 2020 : ces chiens, qu'ils rattachent à la même lignée que les chiens chanteurs captifs et qui sont plus diversifiés, pourraient servir à renouveler leur patrimoine génétique. Elle repose sur trois animaux seulement, l'identité de ces chiens avec les chiens chanteurs est contestée (Dwyer et Minnegal, 2021), et nous n'avons trouvé aucun programme de ce type en cours.
Un chien chanteur peut-il se croiser avec un chien domestique ?
Oui, rien ne s'y oppose biologiquement : tous deux sont des chiens. C'est pourquoi le croisement avec les chiens introduits en Nouvelle-Guinée est présenté comme une menace pour les populations sauvages. Aucune étude ne mesure l'ampleur de ces croisements dans la nature ou en captivité.
Sources
An updated description of the New Guinea singing dog (Canis hallstromi, Troughton 1957)
Koler-Matznick J., Brisbin I. L. Jr, Feinstein M., Bulmer S. · Journal of Zoology, 261(2), 109-118 · 2003doi.org
Koler-Matznick J., Yates B. C., Bulmer S., Brisbin I. L. Jr · Australian Mammalogy, 29(1), 47-56 · 2007web.archive.org
Koler-Matznick J., Stinner M. · Zoo Biology, 30(4), 445-450 · 2011doi.org
Canid reproductive biology: norm and unique aspects in strategies and mechanisms
Nagashima J. B., Songsasen N. · Animals, 11(3), 653 · 2021doi.org
Elucidating biogeographical patterns in Australian native canids using genome wide SNPs
Cairns K. M., Shannon L. M., Koler-Matznick J., Ballard J. W. O., Boyko A. R. · PLoS ONE, 13(6), e0198754 · 2018doi.org
New Guinea highland wild dogs are the original New Guinea singing dogs
Surbakti S., Parker H. G., McIntyre J. K. et al. · Proceedings of the National Academy of Sciences, 117(39), 24369-24376 · 2020doi.org
Relationship between wild-living and village-living dogs in New Guinea
Dwyer P. D., Minnegal M. · Proceedings of the National Academy of Sciences, 118(12), e2020432118 · 2021doi.org
Reply to Dwyer and Minnegal: Genetics supersedes observational records regarding New Guinea canids
Cairns K. M., Surbakti S., Parker H. G. et al. · Proceedings of the National Academy of Sciences, 118(12), e2022368118 · 2021doi.org
The provenance of diagnostic specimens of the New Guinea Singing Dog (résumé)
Dwyer P. D., Minnegal M. · Memoirs of the Queensland Museum – Nature, 63, 27-39 · 2021doi.org
A population of free-living highland wild dogs in Indonesian Papua (résumé)
McIntyre J. K., Wolf L. L., Sacks B. N., Koibur J., Brisbin I. L. Jr · Australian Mammalogy, 42(2), 160-166 (en ligne en 2019) · 2020doi.org
McIntyre J. K., Curry C. J., Wolf L. L., Maury H. K., Numberi L. A., Surbakti S., Davis B. W. · Australian Mammalogy, 47 · 2025doi.org
Numberi L. A., Surbakti S. Br., Keiluhu H. J. · Jurnal Biologi Papua, 14, 11-24 · 2022doi.org
New Guinea Singing Dog Conservation Society · 2008web.archive.org
History of the New Guinea Singing Dog (version archivée en 2013)
New Guinea Singing Dog Conservation Society · 2013web.archive.org
Differences Between New Guinea Singing Dogs and Other Dogs (version archivée en 2012)
New Guinea Singing Dog Conservation Society · 2012web.archive.org
Singing Dog (fiche, consultée le 15 novembre 2026)
San Diego Zoo Wildlife Alliance · 2026animals.sandiegozoo.org
The New Guinea Dingo (Canis familiaris hallstromi), chapitre de Dawn of the Dog
Koler-Matznick J. · Cynology Press (extrait diffusé par la New Guinea Singing Dog Conservation Society) · 2016ngsdconservation.org
History of the Captive Population (version archivée du 24 janvier 2022)
New Guinea Singing Dog Conservation Society · 2022web.archive.org
Breeding Plan (version archivée du 20 octobre 2021)
New Guinea Singing Dog Conservation Society · 2021web.archive.org
New Guinea Singing Dogs (consultée le 15 novembre 2026)
New Guinea Singing Dog Conservation Society · 2026ngsdconservation.org