Dingo · chapitre 10 sur 11
Biologie, reproduction et croissance du Dingo
Une seule portée par an, une meute qui élève les petits et des robes qui ne disent pas la pureté : ce que la science sait de la reproduction du dingo sauvage.
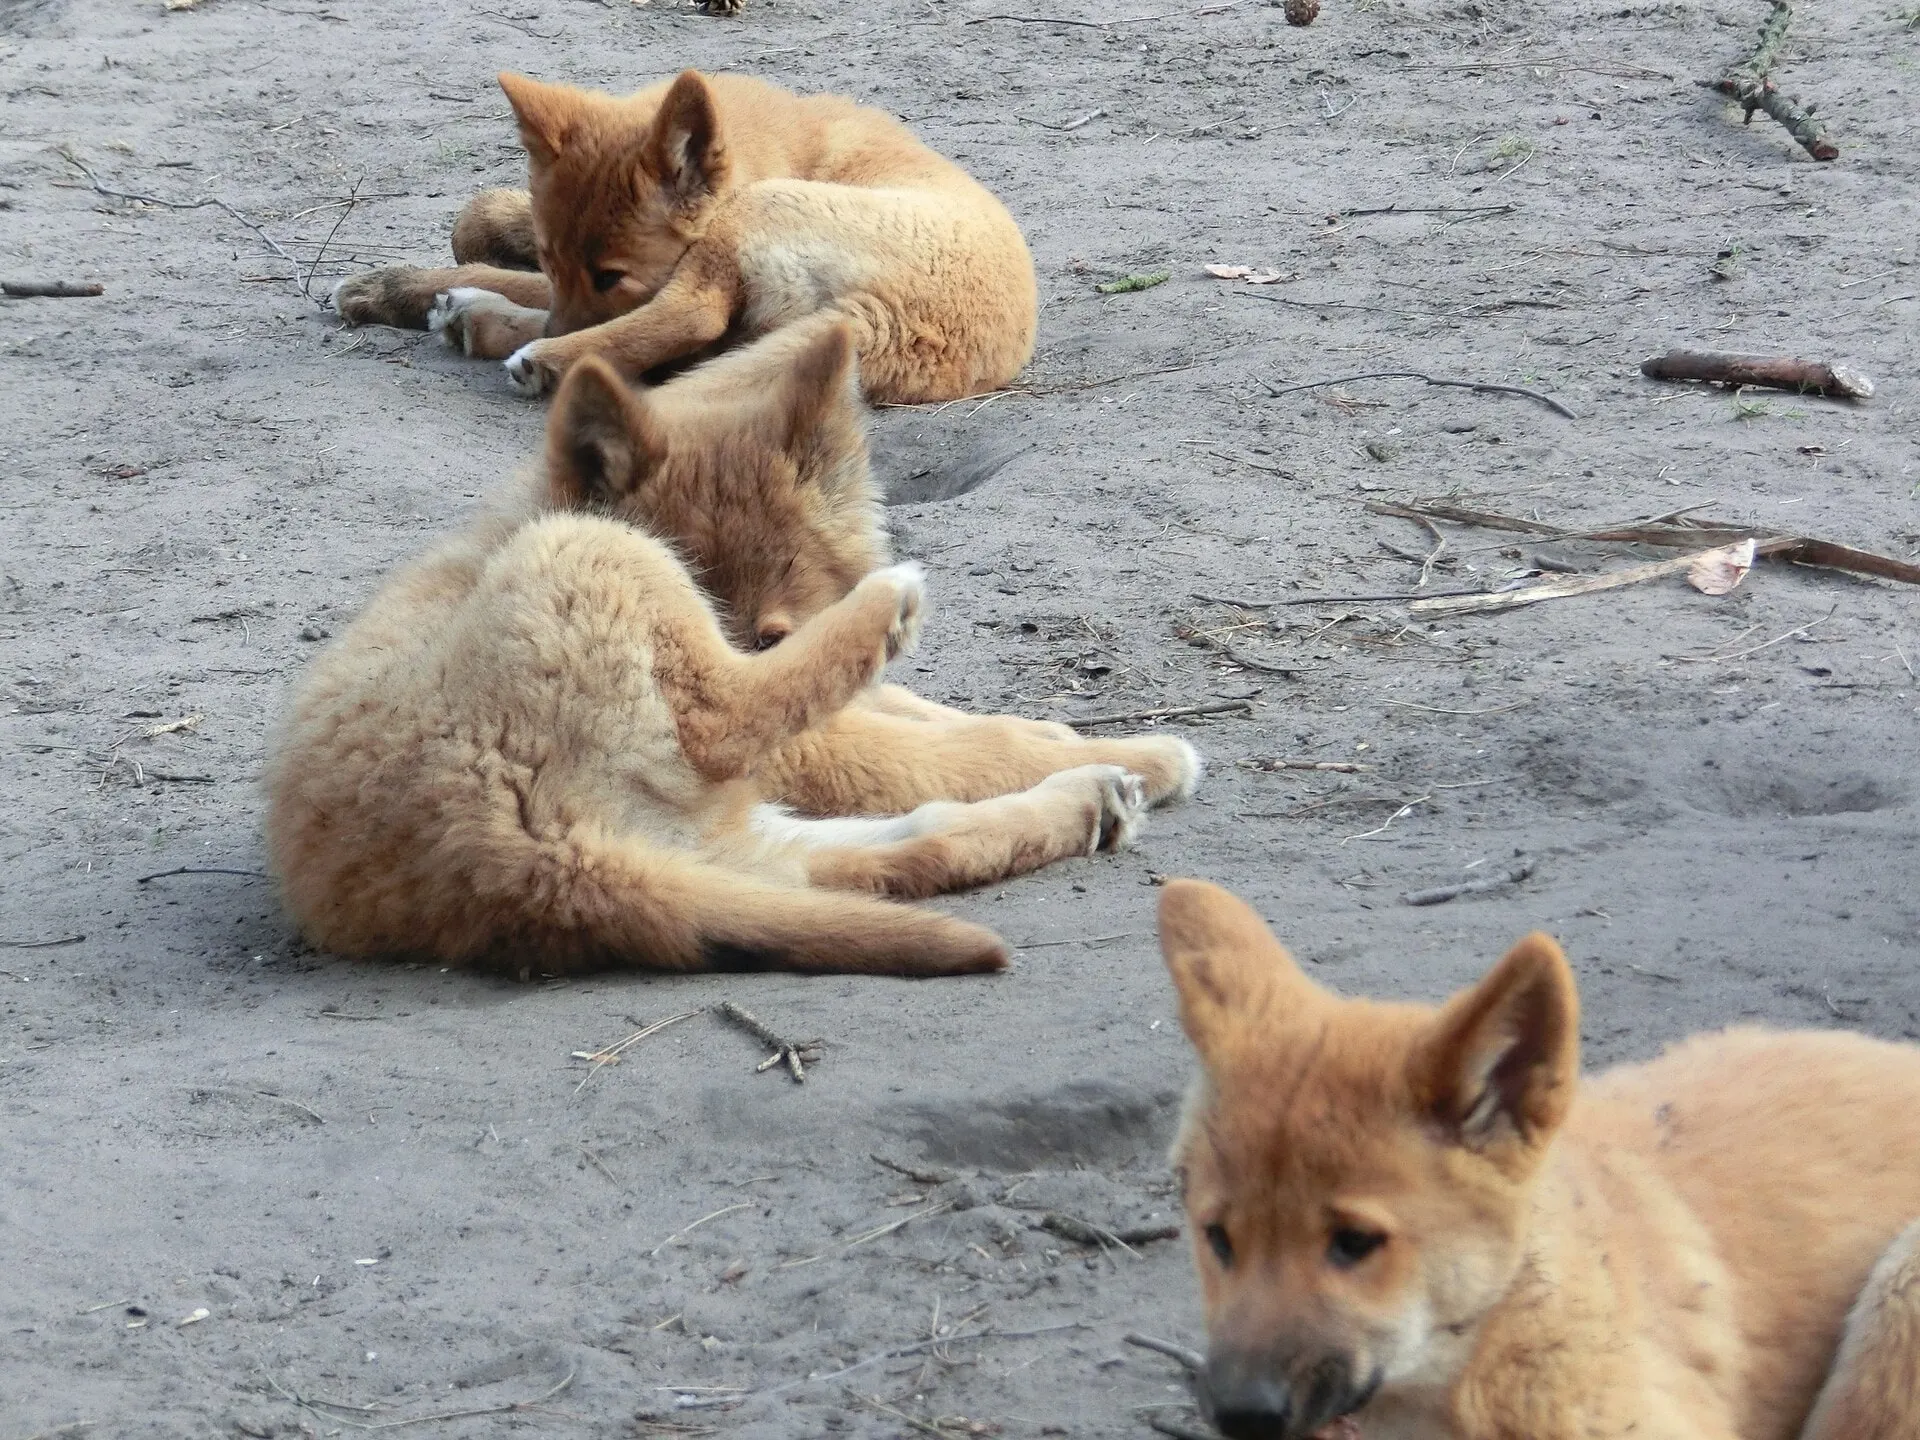
Jeunes dingos de la même portée berlinoise, début avril 2012.Crédit photo :Inugami-barghoCC BY-SA 3.0 (licence, nouvel onglet)Source de la photo (nouvel onglet)
Sommaire du chapitre14 parties
Le dingo n’est pas une race reconnue par la Fédération Cynologique Internationale : c’est un canidé arrivé en Australie il y a plusieurs millénaires et qui y vit, pour l’essentiel, à l’état sauvage. Ce chapitre décrit donc la biologie de sa reproduction comme on décrirait celle d’un loup ; il ne donne aucun conseil d’élevage. Trois traits dominent : une reproduction une seule fois par an, mâle compris, que le chien domestique a presque entièrement perdue ; une vie de meute où peu d’individus élèvent des petits ; une hybridation avec le chien dont l’ampleur fait débat. Les grandes études de terrain datent de la fin des années 1980 et du début des années 1990, et nous n’en avons lu que les résumés ; les travaux génétiques récents sont souvent accessibles en entier. Quand une donnée manque pour le dingo, ce chapitre le dit, et toute valeur du chien domestique est signalée comme telle.
Le corps du dingo : quelques repères
Taille et poids, d’une région à l’autre
Le dingo est un canidé de taille moyenne. Selon l’agence des parcs du Queensland, qui s’appuie sur la monographie de Laurie Corbett (The Dingo in Australia and Asia, 1995), l’adulte moyen, à partir de deux ans, mesure 60 cm au garrot, 1,2 m du bout du nez au bout de la queue et pèse 18 kg. Les pesées compilées par Corbett en 2009 montrent surtout que le poids varie d’une population à l’autre.
| Population (2001-2009) | Mâles : moyenne (effectif) | Femelles : moyenne (effectif) |
|---|---|---|
| K’gari (île Fraser, Queensland) | 19,8 kg (20) | 16,0 kg (13) |
| Hautes terres du Victoria | 15,5 kg (12) | 14,7 kg (16) |
| Centre de l’Australie (Territoire du Nord) | 14,5 kg (25) | 12,4 kg (25) |
| Parc national de Kakadu (Territoire du Nord) | 17,4 kg (12) | 15,2 kg (7) |
| Thaïlande | 15,2 kg (24) | 12,4 kg (19) |
Source : Corbett (2009), cité par le Queensland Parks and Wildlife Service, page « Dingo ecology » consultée le 15 novembre 2026.
Les mâles sont partout plus lourds que les femelles. Les effectifs sont modestes : retenez des ordres de grandeur.
Un appareil génital qui garde la marque de la vie sauvage
En 1993, Peter Woodall et ses collègues ont comparé dingos et chiens domestiques de même gabarit. Les testicules pesaient autant, mais l’épididyme des chiens était plus lourd et stockait plus de spermatozoïdes dans sa partie terminale. Les auteurs y voient une sélection, chez le chien en liberté, de grandes réserves de sperme, utiles quand plusieurs mâles s’accouplent avec une femelle à des moments imprévisibles. Deux animaux supposés hybrides se situaient entre les deux groupes pour certaines mesures (Woodall et al., 1993). Ballard et Wilson (2019) relient cette différence à la saisonnalité : le mâle domestique aurait intérêt à rester prêt toute l’année, le mâle dingo une seule saison. C’est une interprétation, non une démonstration.
Une seule saison de reproduction par an
Ce que montre l’étude de référence
L’étude fondatrice est celle de Peter Catling, Laurie Corbett et Alan Newsome, publiée en 1992 dans Wildlife Research. Elle porte sur des dingos captifs et sauvages, en milieu tempéré et en zone aride du centre de l’Australie. Son résumé est sans ambiguïté : le dingo a une seule période de reproduction par an ; la plupart des accouplements ont lieu en avril-mai et la plupart des naissances en juin-juillet. Ballard et Wilson (2019), qui ont lu l’article en entier, en détaillent les mesures :
- chez le mâle, une augmentation saisonnière significative de la taille des testicules, du poids de la prostate et du volume de semence, accompagnée de changements de l’histologie testiculaire, qui commence de janvier à mars et culmine en avril-mai ;
- chez la femelle, un gonflement de la vulve d’avril à juillet, un poids de l’utérus qui augmente nettement en avril et culmine en mai-juin, quand les femelles portent des fœtus ;
- une lactation qui augmente en juin et culmine en juillet-août ;
- rien de tel chez les chiens domestiques étudiés.
Selon le résumé original, les mâles de première année culminaient deux mois plus tard que les adultes, avec une prostate deux fois plus légère.
Le mâle aussi est saisonnier
Chez le dingo, le mâle suit le même calendrier que la femelle. L’étude de Jones et Stevens (1988), menée sur quatre ans dans les hautes terres de l’est du Victoria, nuance le tableau : les mâles mûrs y restaient fertiles toute l’année, mais le poids des testicules et des épididymes et le nombre de tubes séminifères actifs augmentaient nettement d’avril à juin, au pic des chaleurs des femelles. Une activité testiculaire réduite hors saison n’est pas une stérilité ; et l’échantillon victorien comprenait probablement des hybrides, comme les auteurs l’envisagent eux-mêmes.
Calendriers selon les régions
| Région ou étude | Accouplements | Naissances | Effectifs et période |
|---|---|---|---|
| Milieux tempéré et aride (Catling et al., 1992) | Surtout avril-mai | Surtout juin-juillet | Dingos sauvages et captifs ; effectifs non précisés dans le résumé |
| Hautes terres de l’est du Victoria (Jones et Stevens, 1988) | Pic des chaleurs d’avril à juin | De mars à septembre ; 78 % en juin-août, pic en juillet | Canidés sauvages collectés sur 4 ans ; hybrides probables |
| Basse vallée de la Fortescue, Australie-Occidentale (Thomson, 1992) | Activité préparatoire sur 2 à 3 mois avant les accouplements | De mi-mai à mi-août ; date moyenne le 18 juillet | 170 dingos munis de colliers émetteurs, 1975-1984 |
| Myall Lakes, Nouvelle-Galles du Sud (Alting et al., 2025b) | Mars à mai | — | 10 sites de marquage suivis par pièges photographiques |
| K’gari, Queensland (agence des parcs) | Mars à mai | Juin à août | Synthèse de gestionnaires |
Les fiches générales donnent mars à juin (Musée australien) ou avril à juin (gouvernement du Queensland). Nous n’avons trouvé aucune étude établissant un décalage régulier du calendrier selon la latitude ; l’effet de la sécheresse, lui, est démontré.
La sécheresse retarde et réduit la reproduction
En Australie centrale aride, Catling et ses collègues ont comparé des périodes d’abondance et de sécheresse. Pendant la sécheresse, mâles et femelles réagissaient plus tard, moins de femelles adultes se reproduisaient, aucune femelle de première année ne se reproduisait, et la réponse des mâles était réduite et retardée. Les auteurs notent que des contraintes sociales freinent la reproduction des jeunes dingos, mais que le manque de nourriture semblait, dans leur étude, peser davantage (Catling et al., 1992).
Une divergence mérite d’être signalée : le résumé original parle d’une réponse décalée d’un mois en période de sécheresse, tandis que la synthèse de Ballard et Wilson (2019) évoque un retard de deux mois. Nous n’avons pas pu consulter le texte intégral pour trancher ; le chiffre du résumé, rédigé par les auteurs eux-mêmes, est le plus sûr.
Pourquoi une saison unique ?
Chez la plupart des mammifères sauvages, la saison de reproduction est réglée par la durée du jour, de sorte que les jeunes grandissent quand la nourriture abonde (Ballard et Wilson, 2019). La chienne domestique, elle, n’est pas saisonnière : l’intervalle entre deux chaleurs va de 4 à 13 mois, 7 en moyenne (MSD Veterinary Manual). La Basenji fait exception, avec des chaleurs déclenchées par le raccourcissement des jours (Gardner et al., 2025). Que le chien ait perdu sa saisonnalité en s’adaptant aux déchets des établissements humains reste une hypothèse discutée.
Les chaleurs et l’accouplement
Un long prélude
Paul Thomson, qui a suivi par avion les dingos de la basse Fortescue de 1975 à 1984, a vu le marquage par l’urine patte levée, le grattage du sol, les hurlements et l’activité générale augmenter pendant les deux à trois mois qui précèdent les accouplements. Il en déduisait que le dingo pourrait avoir un proœstrus long, d’un à deux mois (Thomson, 1992, II). C’est une inférence tirée du comportement, non une mesure hormonale ; chez la chienne, le proœstrus dure de 3 jours à 3 semaines, 9 jours en moyenne (MSD Veterinary Manual). Aucune étude hormonale du cycle de la femelle dingo n’a été trouvée.
Dans le parc national de Myall Lakes, Brendan Alting et ses collègues ont suivi dix sites de marquage par pièges photographiques. Les dingos les fréquentaient davantage pendant la saison de reproduction, de mars à mai, et y marquaient plus souvent. Quand un mâle et une femelle venaient ensemble, le mâle marquait plus que la femelle, déposait la majorité des premières (60 %) et des dernières (73 %) marques de la visite, et recouvrait plus souvent les marques de la femelle que l’inverse ; le marquage en tandem s’observait lors de 97 % des visites de couples. Les auteurs y voient une forme de « garde » de la partenaire, le mâle signalant sa présence aux autres mâles (Alting et al., 2025b).
Réceptivité et partenaires
Citant Thomson (1992), la même équipe indique que la femelle est réceptive pendant environ deux semaines et peut s’accoupler avec plusieurs mâles. Ses colliers GPS, posés sur huit dingos de cinq meutes, montrent que les mâles subordonnés sortent davantage de leur territoire pendant la saison de reproduction, sans doute en quête de partenaires, alors que les dominants restent d’autant plus chez eux que la meute compte de jeunes de l’année précédente (Alting et al., 2025a). Huit animaux, c’est peu : ce sont des pistes. À K’gari, l’agence des parcs décrit cette saison comme celle des épreuves de dominance et des combats, parfois graves.
Gestation, tanière et mise bas
Une gestation d’environ neuf semaines
Le Musée australien et la fiche du gouvernement du Queensland donnent une gestation d’environ neuf semaines, comparable à celle du chien. Nous n’avons trouvé aucune étude publiée mesurant la durée de la gestation du dingo à partir d’un repère hormonal. Le chiffre de 63 jours souvent avancé est une valeur du chien domestique ; chez la chienne, la mise bas survient 64 à 66 jours après le pic de l’hormone lutéinisante (MSD Veterinary Manual), et la date de l’accouplement prédit mal celle de la naissance.
La tanière
Les naissances ont lieu dans une tanière : tronc creux, abri sous roche, ancienne garenne de lapins ou terrier de wombat, selon le Musée australien. La description la plus précise vient d’une grande exploitation minière du Grand Désert de Sable, en Australie-Occidentale, où Bradley Smith et Anne-Louise Vague ont relevé 24 tanières dans un rayon d’un kilomètre. Elles étaient en général placées en hauteur, près de la nourriture et de l’eau, dans une végétation, surtout de la spinifex, qui stabilisait le sable et formait un plafond, avec une seule ouverture tournée à l’opposé du soleil levant et du soleil de la journée. La proximité des installations humaines ne semblait pas influer sur leur choix (Smith et Vague, 2017).
La mise bas : aucune observation publiée
Aucune description détaillée d’une mise bas de dingo sauvage, ni aucune donnée sur les naissances difficiles ou la mortalité à la naissance, n’a été trouvée. Les repères établis chez la chienne ne se transposent pas à un animal sauvage qui met bas seul au fond d’une tanière.
La taille des portées
| Donnée | Valeur | Périmètre et limites |
|---|---|---|
| Fiches générales | « Généralement 4 à 6 petits » | Musée australien ; gouvernement du Queensland |
| Synthèse de Ballard et Wilson (2019), d’après Catling et al. (1992) | Une portée de 4 à 5 petits par an | Valeur typique des canidés sauvages selon la synthèse |
| Hautes terres de l’est du Victoria | 5,5 en moyenne (2 à 9), comptés sur les fœtus | Jones et Stevens (1988) ; population probablement métissée |
| Grand Désert de Sable (site minier) | 37 petits de 2 à 4 semaines dans 4 tanières actives, dont 18 d’âges différents dans une seule | Smith et Vague (2017) ; tanières communes |
| Hybrides dingo × chien | Portées plus grandes que celles des dingos | Catling et al. (1992), sans chiffre dans le résumé |
| Chiens de race, Norvège, 2006-2007 (pour comparaison) | 5,4 en moyenne ; 3,5 (races miniatures) à 7,1 (races géantes) | Borge et al. (2011) : 10 810 portées de 224 races |
Une taille de portée comptée sur les fœtus surestime forcément le nombre de petits sevrés. La tanière du Grand Désert de Sable abritant 18 petits d’âges différents n’est pas une portée géante : elle montre que plusieurs femelles peuvent partager une tanière là où nourriture et eau d’origine humaine abondent (Smith et Vague, 2017). Enfin, les portées plus grandes des hybrides rappellent qu’un échantillon métissé ne décrit pas forcément le dingo.
Qui se reproduit dans une meute ?
En général, le seul couple dominant
Le dingo vit en meutes familiales territoriales. Sur la Fortescue, entre 1975 et 1978, la plupart des dingos appartenaient à cinq meutes distinctes de 3 à 12 membres en moyenne mensuelle, sur des territoires de 44,5 à 113,2 km² qui se chevauchaient à peine (Thomson, 1992, IV). Selon l’agence des parcs du Queensland et le Musée australien, en général seul le couple dominant élève des petits, les autres membres aidant à les nourrir.
Les observations de terrain nuancent cette règle. Sur la Fortescue, entre 1975 et 1984, la plupart des femelles devenaient gestantes, y compris certaines de 9 à 10 mois, mais toutes les portées n’étaient pas élevées ; les meutes élevaient en moyenne 1,1 portée par an, et l’on a vu des meutes élever dans la même année les portées de deux femelles (Thomson et al., 1992, V). Autrement dit, la limitation ne porte pas forcément sur l’accouplement, mais sur la survie des portées.
L’infanticide de la femelle dominante
C’est ce mécanisme qu’a mis en évidence Laurie Corbett dans une colonie captive. Les dingos y ont formé une meute intégrée de sept adultes et d’une seule portée ; sur les 43 dingos que la colonie aurait pu compter, 16 seulement vivaient encore au bout de trois ans, les autres ayant été exclus ou tués. Toutes les femelles étaient devenues gestantes, mais la femelle dominante a tué tous les petits des autres femelles, bien qu’elle leur fût étroitement apparentée. Corbett en concluait que, chez le dingo, le principal mécanisme de suppression de la reproduction est l’infanticide par la femelle dominante, alors que chez le loup les dominants empêchent plutôt les subordonnés de s’accoupler. Il observait aussi deux hiérarchies, mâle et femelle, maintenues par l’agression, avec la plupart des changements de rang pendant la saison de reproduction (Corbett, 1988).
Cette étude porte sur une seule colonie captive ; on ne sait pas avec quelle fréquence l’infanticide survient en liberté. L’agence des parcs du Queensland l’évoque toutefois pour K’gari, en indiquant que les mères dominantes peuvent tuer les petits d’une autre mère qui s’est accouplée au sein de la meute.
Ce que change l’abattage
En zone aride, les sites où des dingos avaient été éliminés dans les deux années précédentes présentaient peu de marquage, signe de groupes fracturés, sans abondance plus faible (Wallach et al., 2009). Un modèle publié en 2025 suppose qu’avec un accouplement hiérarchique, les subordonnés se reproduisent davantage quand les dominants disparaissent (Prowse et al., 2025). Ces travaux ne démontrent pas, à eux seuls, qu’un abattage accroît le nombre de portées.
Du petit au jeune adulte
Les premières semaines : une mère presque toujours présente, un père en sentinelle
Le seul suivi détaillé vient de la captivité. Robyn Hudson et ses collègues ont filmé en continu les tanières de quatre couples de dingos génétiquement purs au dingo Discovery Centre, pendant les trois semaines suivant la naissance, juste avant le début du sevrage. Les mères occupaient la tanière presque sans interruption la nuit, moins le jour, et y allaitaient l’essentiel du temps. Les pères restaient dehors, sans en être chassés, mais passaient beaucoup de temps couchés sur la tanière, ce qui évoque une garde, à confirmer (Hudson et al., 2019). Les auteurs y voient un écho des rares mentions de soins biparentaux chez le dingo sauvage. En liberté, Thomson (1992) a décrit un élevage des petits, aide d’autres membres de la meute comprise, proche de celui des canidés apparentés.
Calendrier du développement
| Étape | Âge ou période | Source et périmètre |
|---|---|---|
| Femelle confinée à la tanière et à ses abords | 2 à 3 mois après la mise bas (environ mai à septembre) | Alting et al. (2025a), d’après Purcell (2010) ; présentation générale |
| Début du sevrage | Après les trois premières semaines | Hudson et al. (2019) ; 4 portées captives |
| Sevrage | Vers 2 mois | Musée australien |
| Sortie de la tanière | Août-septembre | Alting et al. (2025a) |
| Pleine mobilité | Novembre-décembre | Alting et al. (2025a) |
| Apprentissage de la chasse | Septembre à novembre | Agence des parcs du Queensland (K’gari) |
| Taille adulte | Vers 7 mois | Musée australien |
| Indépendance | 3 à 4 mois, ou, dans une meute, au début de la saison de reproduction suivante | Agence des parcs du Queensland (K’gari) |
Aucune source consultée ne donne l’âge d’ouverture des yeux, d’apparition des dents ou de redressement des oreilles chez le dingo. Les repères du chiot domestique ne peuvent pas être transposés sans précaution à un petit né et élevé dans une tanière. Sur l’indépendance, le Musée australien ajoute qu’après le sevrage les jeunes peuvent être abandonnés ou rester environ un an avec leurs parents.
La couleur change avec l’âge
À K’gari, l’agence des parcs signale que beaucoup de dingos naissent avec des poils noirs et des marques sombres sur le dos et la queue, qui pâlissent avec l’âge jusqu’au sable doré typique de l’île. Un jeune assombri n’est donc pas forcément un futur adulte noir, ni un hybride.
Une survie faible
Selon l’agence des parcs du Queensland, en général deux ou trois petits seulement atteignent la saison de reproduction suivante. C’est une estimation de gestionnaires, sans effectif publié ; nous n’avons trouvé aucun taux de survie des jeunes mesuré sur le terrain. La modélisation de la population de K’gari publiée en 2025 déplore précisément ce manque de données sur la reproduction et la mortalité (Appleby et al., 2025).
Maturité sexuelle et dispersion
Les données de terrain montrent une maturité très variable.
| Population | Femelles | Mâles |
|---|---|---|
| Synthèse du Musée australien | La plupart mûres vers 2 ans | Vers 1 an |
| Hautes terres de l’est du Victoria (Jones et Stevens, 1988) | Premières chaleurs entre 1 et 4 ans ; 36 % seulement des femelles de moins de 2 ans sont mûres | Parmi les animaux d’au moins 10 kg, spermatogenèse commencée chez 63 % des moins de 2 ans et 97 % des plus de 3 ans |
| Basse Fortescue (Thomson et al., 1992, V) | Gestations observées dès 9 à 10 mois | — |
| Milieux tempéré et aride (Catling et al., 1992) | Faible proportion de femelles reproductrices dès la première année ; aucune en période de sécheresse | Réponse testiculaire dès la première année, avec un pic plus tardif |
Le départ du groupe natal est tout aussi variable : les jeunes peuvent quitter leur meute dès un an ou y rester plusieurs années (Alting et al., 2025a). Sur la Fortescue, 25 dingos se sont dispersés seuls ; la distance moyenne parcourue au-delà des territoires connus était de 20,1 km (19 animaux, de 1 à 184 km). Les mâles se dispersaient plus souvent et plus loin que les femelles, surtout quand la densité était forte et la nourriture rare, et les humains causaient une grande partie de la mortalité des dingos en dispersion (Thomson et al., 1992, VI).
Les robes et leur génétique
Les couleurs observées
Le gouvernement du Queensland décrit un dingo généralement rouge, gingembre ou jaune sable, parfois blanc pur, noir et feu ou noir uni ; selon l’agence des parcs, la plupart portent des marques blanches aux pattes, au bout de la queue et au poitrail, propres à chaque individu.
La plus ancienne série chiffrée remonte à 1985. Alan Newsome et Laurie Corbett ont classé les canidés sauvages d’après le crâne (1 184 crânes de l’intérieur du continent, 407 du sud-est, collectés de 1966 à 1979) et noté leur robe.
| Robe | Australie intérieure, isolée | Sud-est peuplé |
|---|---|---|
| Gingembre | 88,6 % | 45,9 % |
| Noir et feu | 3,8 % | 19,1 % |
| Blanc intégral | 1,9 % | 0,2 % |
| Robes « rompues » (gingembre taché de blanc, de noir ou de bleuté ; noir, brun ou bleuté uni ; noir et blanc ; bringé) | 5,7 % | 34,8 % |
Source : Newsome et Corbett (1985), résumé.
Les auteurs tenaient alors le gingembre, le noir et feu et le blanc intégral pour les couleurs du dingo, et les robes rompues, apparues aussi dans des croisements expérimentaux avec des chiens, pour un signe de métissage. Pourtant, en 2014, des peaux du XIXᵉ siècle, antérieures à l’essentiel du métissage, ont révélé des combinaisons très variées de jaune, de blanc, de gingembre et de teintes plus sombres, du feu au noir (Crowther et al., 2014).
La robe ne dit pas la pureté
C’est le résultat le plus important de ce chapitre pour qui veut « reconnaître » un dingo. En 2021, Kylie Cairns et ses collègues ont génotypé 1 325 canidés sauvages du sud-est de l’Australie dont la robe était connue. Aucune couleur ne permettait de distinguer les dingos sans ascendance canine des dingos métissés. Contrairement à l’idée reçue, les robes bringées et panachées étaient associées positivement aux dingos sans ascendance canine et moins fréquentes chez les dingos métissés. Les auteurs concluent que la couleur ne doit pas servir à juger de l’ascendance, et envisagent que ces variants de couleur soient anciens, peut-être issus d’une introgression adaptative comparable à celle de la robe noire chez les loups d’Amérique du Nord (Cairns et al., 2021b). Ces analyses reposaient sur des microsatellites, dont on verra plus bas les limites.
Dans le nord du Queensland, des habitants aborigènes et insulaires du détroit de Torres reconnaissaient le dingo à un pelage lisse d’une seule couleur de fond, tout en acceptant des traits réputés « hybrides », comme une robe charbonnée ou l’absence de pattes blanches (Brookes et al., 2020).
Ce que l’on sait des gènes
Chez le chien, le roux peut avoir deux origines génétiques principales : l’allèle fauve dominant Ay du gène ASIP (locus A) ou deux copies de l’allèle rouge récessif e du gène MC1R (locus E). Une étude de 2019 comparant le Kelpie au dingo apporte une réponse nette pour ce dernier.
| Gène (locus) | Observation chez le dingo | Effectif |
|---|---|---|
| ASIP (locus A) | Allèle fauve dominant Ay majoritaire : 16 animaux homozygotes Ay, les autres porteurs de l’allèle de type sauvage ; le dingo séquencé en entier est homozygote Ay | 22 séquences de l’exon 4 (Cairns et Wilton, 2016), plus 1 génome |
| MC1R (locus E) | Allèle rouge récessif e chez un seul animal, à l’état hétérozygote (fréquence inférieure à 2 %) | 26 dingos |
| CBD103 (locus K) | Allèle du noir dominant KB absent ; tous homozygotes pour l’autre allèle, un résultat équivoque | 25 dingos |
Source : Chew et al. (2019), qui reprennent les séquences publiées par Cairns et Wilton (2016) et un génome de dingo provenant du Bargo Dingo Sanctuary.
Le roux du dingo est donc un fauve dû au locus A, non au rouge récessif qui colore de nombreux chiens roux, dont les Kelpies gingembre. Les auteurs relèvent aussi, au gène voisin RALY, un variant associé au dessin « en selle », masqué chez le dingo par le fauve dominant, et un variant du gène MITF déjà décrit chez un loup scandinave (Chew et al., 2019). Une vaste étude de 2021 sur le gène ASIP note de son côté que le fauve dominant, très répandu chez les chiens de régions diverses, se retrouve chez le dingo, « fréquemment fauve dominant » (Bannasch et al., 2021). Le dessin noir et feu relève chez le chien d’un autre allèle du même gène, at ; sa fréquence chez le dingo n’a pas été mesurée dans ces travaux, pas plus que la génétique de la robe blanche, du bringé ou du noir uni du dingo. Ces effectifs sont petits : ce sont des indications, non des fréquences de population.
L’hybridation avec le chien
Ce que l’on sait de la reproduction des hybrides
Les deux études qui ont examiné la saisonnalité des hybrides ne concordent pas.
| Étude | Échantillon | Résultat |
|---|---|---|
| Catling et al. (1992) | Croisés dingo × chien, régions de l’étude | Pas de variation saisonnière marquée de plusieurs paramètres testiculaires ; portées plus grandes ; certains se reproduisaient toute l’année |
| Ballard et Wilson (2019), d’après Catling et al. | Même étude | Aucune variation saisonnière significative chez les mâles hybrides ; une femelle hybride en lactation en novembre |
| Cursino et al. (2017) | 71 appareils génitaux de femelles, zones urbaines du sud-est du Queensland où l’hybridation est réputée élevée | Une seule saison annuelle, en hiver, comme chez le dingo ; deux femelles seulement présentaient un cycle hors saison |
Le résumé de Cursino et ses collègues présente ces deux femelles comme 1,4 % de l’échantillon, alors que 2 sur 71 font 2,8 % ; et il ne précise pas si les animaux, supposés hybrides parce que venus de zones très métissées, ont été génotypés. Une étude de 2025 sur la Basenji résume : les femelles hybrides semblent avoir hérité de la saisonnalité du dingo, pas les mâles étudiés par Catling (Gardner et al., 2025). Les hybrides sont fertiles, puisque des rétrocroisements sont observés, mais leur fertilité comparée n’a pas, à notre connaissance, été mesurée.
Mesurer la pureté : des crânes à l’ADN
| Période | Méthode | Ce qu’elle a montré |
|---|---|---|
| 1985 | Mesures du crâne | 97,5 % de dingos, 0,1 % de chiens et 2,4 % d’hybrides dans l’intérieur ; 55,3 %, 10,8 % et 33,9 % dans le sud-est (Newsome et Corbett, 1985) |
| 1999 | Premiers microsatellites | 14 marqueurs testés sur 16 dingos et 16 chiens croisés ; diversité bien plus faible chez le dingo, un locus peut-être diagnostique (Wilton et al., 1999) |
| 2015 | Test de 24 microsatellites | 3 637 canidés en liberté : 46 % de dingos purs ; 99 % d’hybrides ou de chiens dans le sud-est ; 13 % d’hybrides dans le centre isolé (Stephens et al., 2015) |
| 2021 | Microsatellites, 5 039 canidés | 31 chiens féraux et 27 hybrides de première génération seulement (Cairns et al., 2021a) |
| 2023 | Puce SNP, 195 474 marqueurs | 307 dingos sauvages : 70 % purs, 15 % de rétrocroisements anciens, 15 % de rétrocroisements récents, aucun hybride de première génération ni chien féral (Cairns et al., 2023) |
Le test microsatellite est décrit comme comptant 23 marqueurs dans l’article de 2023 et 24 locus dans le résumé de l’étude de 2015 ; nous signalons cet écart sans pouvoir l’expliquer. Le test repose sur les travaux du généticien Alan Wilton, auquel l’étude de 2023 rend hommage, mais l’article de Wilton de 1999 portait sur 14 microsatellites.
Le tournant des SNP
En 2023, Kylie Cairns et ses collègues ont génotypé 307 dingos sauvages et 84 captifs sur une puce de plus de 700 000 marqueurs, ramenés à 195 474 SNP après filtrage. Pour 113 animaux testés par les deux méthodes, les microsatellites surestimaient l’ascendance canine et classaient mal l’animal dans 20 % des cas, de 6 % pour la population de l’Ouest à 44 % pour celle du Big Desert, dans l’ouest du Victoria.
| État ou territoire | Dingos testés | Purs (plus de 99 % dingo) | Rétrocroisements anciens (93-99 %) | Rétrocroisements récents (55-93 %) |
|---|---|---|---|---|
| Australie-Occidentale | 42 | 83,3 % | 14,3 % | 2,4 % |
| Queensland | 68 | 54,4 % | 19,1 % | 26,5 % |
| Nouvelle-Galles du Sud (et ACT) | 103 | 62,1 % | 17,5 % | 20,4 % |
| Victoria | 62 | 87,1 % | 6,5 % | 6,5 % |
| Territoire du Nord | 16 | 68,8 % | 18,8 % | 12,5 % |
| Australie-Méridionale | 16 | 87,5 % | 12,5 % | — |
| Total des dingos sauvages | 307 | 70,0 % | 15,0 % | 15,0 % |
Source : Cairns et al. (2023), tableau 2. La plupart des animaux sauvages provenaient de programmes de contrôle des populations.
Le Victoria, naguère présenté comme presque entièrement métissé, apparaît ici majoritairement pur.
Un débat qui n’est pas clos
L’étude de 2023 n’a pas clos la discussion : deux travaux génomiques publiés en 2025 aboutissent à des conclusions opposées.
| Étude | Données | Conclusion sur l’apport du chien |
|---|---|---|
| Cairns et al. (2023) | 307 dingos sauvages et 84 captifs ; 195 474 SNP | Apport limité : 70 % de dingos sauvages purs, aucun hybride de première génération à l’état sauvage ; les microsatellites surestimaient l’ascendance canine |
| Weeks et al. (2025) | 434 canidés australiens ; SNP | Aucune introgression détectée entre dingos et chiens domestiques, sans exclure un niveau très faible ; des variations ancestrales partagées auraient été prises à tort pour de l’hybridation |
| Scarsbrook et al. (2025) | 33 dingos actuels, 18 génomes anciens de la plaine de Nullarbor, 2 dingos de Nouvelle-Guinée du début du XXᵉ siècle | Pas d’ascendance européenne au nord-ouest ; chez les dingos sauvages du sud-est, de 9,7 à 22,5 % selon les individus par la méthode des rapports F4 (7,0 à 23,2 % chez les captifs) ; environ 12 % (de 0 à 19,7 %) avec une analyse ADMIXTURE à deux composantes regroupant sud-est, captifs et dingos sauvages de Nouvelle-Guinée |
Selon Scarsbrook et ses collègues, ces apports datent en moyenne d’une soixantaine d’années : la plupart coïncident avec le contrôle des populations à grande échelle lancé dans les années 1960, qui a pu raréfier les partenaires et désorganiser les meutes. Certains allèles canins auraient même pu atténuer une dépression de consanguinité, et les dingos ont conservé leur singularité génétique (Scarsbrook et al., 2025). Une étude de 2026 fondée sur des génomes précoloniaux retrouve des apports coïncidant avec l’époque coloniale (Ravishankar et al., 2026). Échantillons, populations de référence et méthodes diffèrent ; aucune de ces conclusions ne fait encore autorité.
Un constat, en revanche, est partagé par toutes les grandes enquêtes : les chiens féraux, c’est-à-dire des chiens domestiques sans ascendance dingo vivant à l’état sauvage, sont rares, moins de 1,5 % des animaux testés (Stephens et al., 2015 ; Cairns et al., 2021b). Le croisement inverse, du dingo vers les chiens des communautés, paraît lui aussi limité dans les régions isolées : dans 21 localités rurales et isolées d’Australie-Occidentale, sur 345 chiens de camp testés par 23 microsatellites, un seul était un dingo, 96 % étaient des chiens et 3,5 % des hybrides (Kreplins et al., 2024).
Consanguinité et petites populations
Un lignage fondé par peu d’animaux
Le dingo est, dans son ensemble, génétiquement peu diversifié. Sur douze génomes de dingos, la diversité nucléotidique était inférieure de 36 % à celle de chiens de race pourtant très consanguins et 3,3 fois plus faible que celle des loups, avec 1,6 à 4,7 fois plus de segments homozygotes que les autres canidés ; les auteurs y voient la trace de goulets d’étranglement et d’effets fondateurs lors de l’arrivée en Australie (Kumar et al., 2023). Les génomes anciens confirment que les dingos d’avant l’arrivée des Européens étaient déjà plus consanguins que la plupart des races canines actuelles. Dans la même étude, la part du génome située dans des segments homozygotes allait de 44 à 85 % chez les dingos sauvages actuels, contre 6 à 21 % chez les chiens de village et 11 à 69 % dans les races testées ; elle atteignait 63 à 86 % chez les dingos captifs, 75 à 85 % au Big Desert, où il resterait moins de 40 adultes selon les recensements cités, et 85 % à K’gari (Scarsbrook et al., 2025). L’étude de 2023 sur les SNP trouvait, pour toutes les populations sauvages, une homozygotie médiane élevée, et nettement plus encore pour la population isolée du Big Desert (Cairns et al., 2023), dont une autre équipe avait décrit la faible diversité génétique avec 34 microsatellites (Stephens et al., 2022).
Le cas de K’gari
| Étude | Échantillon | Résultat |
|---|---|---|
| Conroy et al. (2021) | 175 dingos de K’gari et 264 du continent voisin ; 9 microsatellites | Diversité significativement plus faible sur l’île ; taille efficace de population de 25,7 contre 103,8 sur le continent |
| Miller et al. (2024) | 112 dingos de l’île prélevés de 1996 à 2020 ; 72 454 SNP | Diversité déjà plus faible au départ, en baisse significative après l’abattage de 2001 ; pas de structure spatiale, ce qui suggère des échanges entre meutes |
| Leon-Apodaca et al. (2024) | 18 génomes complets, dont 5 de K’gari | Segments homozygotes très longs (plus de 5 mégabases) plus fréquents sur l’île : petite population, isolement, consanguinité, effet fondateur ; élimination probable des mutations les plus nocives, mais pas des mutations faiblement délétères |
L’île, d’environ 1 660 km², abrite une population estimée entre 70 et 200 dingos (Miller et al., 2024). Les auteurs de la modélisation de 2025 concluent qu’en conditions favorables et sans perturbation la population a de fortes chances de se maintenir sur 50 et 100 ans, mais qu’une mortalité élevée et répétée accroît nettement le risque d’extinction ; une reproduction plus libre entre partenaires, un meilleur succès reproducteur des femelles et davantage de mâles disponibles le réduisent (Appleby et al., 2025).
Les dingos en captivité et les sanctuaires
Des dingos vivent dans des sanctuaires, des zoos et chez des particuliers, sous des réglementations propres à chaque État australien, que ce chapitre ne traite pas. L’Australian Dingo Foundation, organisation bénévole créée en 2006, gère le dingo Discovery Sanctuary and Research Centre, fondé en 1990 sur 16 hectares environ au pied des Macedon Ranges, à 35 minutes du centre de Melbourne ; elle se donne pour but de préserver « le patrimoine génétique du dingo originel ». Sa page d’accueil ne détaille ni l’effectif ni les méthodes de contrôle génétique. Entre 2010 et 2020, elle a rendu possibles au moins 21 études publiées, notamment sur la reproduction et les soins parentaux (Smith et al., 2021) ; le suivi des tanières de Hudson et ses collègues en est un exemple.
Ces populations captives ont leurs propres limites génétiques. Dans l’étude de 2023, les 84 dingos captifs formaient une population génétique distincte des dingos sauvages, signe d’échanges limités avec eux. Parmi eux, 63,1 % étaient purs, 7,1 % des rétrocroisements anciens, 13,1 % des rétrocroisements récents, 8,3 % des hybrides de première génération et 8,3 % des rétrocroisements à dominante canine ; les sept hybrides de première génération de toute l’étude étaient nés et vivaient en captivité (Cairns et al., 2023). Une reproduction en captivité ne garantit donc ni la pureté ni la représentativité de la diversité sauvage.
Ce qu’il faut retenir
Quelques traits sont solides : une saison unique par an, partagée par les deux sexes ; une gestation d’environ neuf semaines ; des portées moyennes dont peu de petits survivent ; une reproduction concentrée sur un couple, au besoin par l’infanticide ; une maturité retardée par la disette. Les lacunes restent nombreuses : ni mesure hormonale du cycle, ni chronologie du développement dans la nature, ni taux de survie mesuré. Côté génétique, la robe ne dit rien de la pureté, les anciens tests surestimaient l’hybridation, l’ampleur réelle des apports canins reste débattue et les populations isolées appellent une vigilance sur la consanguinité.
Questions fréquentes
Le dingo n'a-t-il vraiment qu'une portée par an ?
Oui, c'est l'un des traits les mieux établis de sa biologie. Les femelles comme les mâles suivent un cycle annuel, avec des accouplements en automne austral et des naissances en hiver. Le chien domestique, à de rares exceptions près comme la Basenji, n'a pas de saison de reproduction.
Combien de petits compte une portée de dingo ?
Les sources australiennes indiquent en général 4 à 6 petits. Dans les hautes terres de l'est du Victoria, la taille de portée comptée sur les fœtus était de 5,5 en moyenne (2 à 9), mais l'échantillon comprenait probablement des hybrides. La survie est faible : à K'gari, l'agence des parcs estime que deux ou trois jeunes seulement atteignent la saison de reproduction suivante.
Combien de temps dure la gestation de la femelle dingo ?
Environ neuf semaines selon le Musée australien et l'administration du Queensland, soit une durée comparable à celle de la chienne. Aucune mesure hormonale publiée ne précise cette durée chez le dingo : le chiffre de 63 jours souvent cité est transposé du chien.
Un dingo roux est-il forcément pur, et un dingo bringé forcément hybride ?
Non. Une étude génétique de 1 325 canidés sauvages du sud-est de l'Australie n'a trouvé aucune robe capable de distinguer les dingos purs des dingos métissés, et les robes bringées ou panachées étaient même plus fréquentes chez les dingos sans ascendance canine. Seul un test ADN renseigne sur l'ascendance.
Les hybrides dingo × chien ont-ils deux portées par an ?
Les études divergent. En 1992, Catling et ses collègues ont observé des hybrides sans saisonnalité marquée, dont certains se reproduisaient toute l'année. En 2017, l'examen de 71 appareils génitaux de femelles hybrides du sud-est du Queensland a montré au contraire une saison unique en hiver, comme chez le dingo.
Comment sait-on si un dingo est pur ?
Par un test ADN. Le test de référence a longtemps reposé sur 23 ou 24 microsatellites ; une étude de 2023 sur 195 474 SNP a montré qu'il surestimait l'ascendance canine et classait mal 20 % des animaux testés par les deux méthodes. L'apparence, la couleur ou la forme du crâne ne suffisent pas.
Les dingos de K'gari sont-ils consanguins ?
Leur diversité génétique est nettement plus faible que celle des dingos du continent, et leurs génomes portent de longs segments homozygotes, signe de consanguinité. La population, estimée à 70 à 200 animaux, a perdu de la diversité après l'abattage de 2001. Une étude suggère toutefois qu'elle élimine les mutations les plus nocives.
Sources
Catling P. C., Corbett L. K., Newsome A. E. · Wildlife Research, 19(2), 195-209 · 1992doi.org
Reproduction in wild canids, Canis familiaris, from the eastern highlands of Victoria (résumé)
Jones E., Stevens P. L. · Australian Wildlife Research, 15(4), 385-397 · 1988doi.org
Thomson P. C. · Wildlife Research, 19(5), 519-529 · 1992doi.org
Thomson P. C. · Wildlife Research, 19(5), 543-563 · 1992doi.org
Thomson P. C., Rose K., Kok N. E. · Wildlife Research, 19(5), 565-583 · 1992doi.org
Thomson P. C., Rose K., Kok N. E. · Wildlife Research, 19(5), 585-595 · 1992doi.org
Corbett L. K. · Ethology, 78(3), 177-198 · 1988doi.org
Do female dingo-dog hybrids breed like dingoes or dogs? (résumé)
Cursino M. S., Harriott L., Allen B. L., Gentle M., Leung L. K.-P. · Australian Journal of Zoology, 65(2), 112-119 · 2017doi.org
Woodall P. F., Pavlov P., Tolley L. K. · Australian Journal of Zoology, 41(2), 133-140 · 1993doi.org
The Australian dingo: untamed or feral?
Ballard J. W. O., Wilson L. A. B. · Frontiers in Zoology, 16, 2 · 2019doi.org
The denning behaviour of dingoes (Canis dingo) living in a human-modified environment (résumé)
Smith B. P., Vague A.-L. · Australian Mammalogy, 39(2), 161-168 · 2017doi.org
Hudson R., Rödel H. G., Elizalde M. T., Kennedy G. A., Smith B. P. · Mammalian Biology, 94, 86-91 · 2019doi.org
Dingo movement depends on sex, social status and litter size
Alting B. F., Pitcher B. J., Campbell-Ward M. L., Jordan N. R. · Royal Society Open Science, 12(7), 250255 · 2025doi.org
Alting B. F., Pitcher B. J., Jordan N. R. · Behavioral Ecology and Sociobiology, 79(10) · 2025doi.org
Wallach A. D., Ritchie E. G., Read J., O'Neill A. J. · PLoS ONE, 4(9), e6861 · 2009doi.org
Prowse T. A. A., Birand A. C., Stephens D., Woolnough A. P. · Molecular Ecology, 34(1), e17592 · 2025doi.org
Dingo (fiche, mise à jour le 26 mai 2026)
Burrell S., Eldridge M. · Australian Museum · 2026australian.museum
Dingo (Canis familiaris) — fiche d'espèce restreinte (mise à jour le 30 avril 2026)
Business Queensland, gouvernement du Queensland · 2026business.qld.gov.au
Dingo ecology — K'gari, Great Sandy National Park (consulté le 15 novembre 2026)
Queensland Parks and Wildlife Service · 2026parks.qld.gov.au
Newsome A. E., Corbett L. K. · Australian Journal of Zoology, 33(3), 363-375 · 1985doi.org
An updated description of the Australian dingo (Canis dingo Meyer, 1793) (résumé)
Crowther M. S., Fillios M., Colman N., Letnic M. · Journal of Zoology, 293(3), 192-203 · 2014doi.org
Cairns K. M., Newman K. D., Crowther M. S., Letnic M. · Journal of Zoology, 314(2), 104-115 · 2021doi.org
Chew T., Willet C. E., Haase B., Wade C. M. · Genes, 10(5), 337 · 2019doi.org
Dog colour patterns explained by modular promoters of ancient canid origin
Bannasch D. L. et al. · Nature Ecology & Evolution, 5, 1415-1423 · 2021doi.org
Brookes V., Degeling C., van Eeden L. M., Ward M. P. · Animals, 10(7), 1230 · 2020doi.org
Microsatellite variation in the Australian dingo (résumé)
Wilton A. N., Steward D. J., Zafiris K. · Journal of Heredity, 90(1), 108-111 · 1999doi.org
Stephens D., Wilton A. N., Fleming P. J. S., Berry O. · Molecular Ecology, 24(22), 5643-5656 · 2015doi.org
The myth of wild dogs in Australia: are there any out there? (résumé)
Cairns K. M., Crowther M. S., Nesbitt B. J., Letnic M. · Australian Mammalogy, 44(1), 67-75 · 2021doi.org
Cairns K. M., Crowther M. S., Parker H. G., Ostrander E. A., Letnic M. · Molecular Ecology, 32(15), 4133-4150 · 2023doi.org
Genetic structure and common ancestry expose the dingo-dog hybrid myth (résumé)
Weeks A. R., Kriesner P., Bartoniček N., van Rooyen A. R. J., Cairns K. M., Ahrens C. W. · Evolution Letters, 9(1), 1-12 · 2025doi.org
The impacts of European arrival on Australian dingoes
Scarsbrook L., Cairns K. M., Mitchell K. J. et al. · Proceedings of the National Academy of Sciences, 122(48), e2421749122 · 2025doi.org
Ravishankar S., Nguyen N. C., Taufik L. et al. · Conservation Letters, 19(3) · 2026doi.org
An isolated population reveals greater genetic structuring of the Australian dingo (résumé)
Stephens D., Fleming P. J. S., Sawyers E., Mayr T. P. · Scientific Reports, 12, 19105 · 2022doi.org
An assessment of dingo ancestry in camp dogs in Western Australia (résumé)
Kreplins T. L., Stephens D., Laing N. G., Oskam C. L. · Australian Journal of Zoology, 72(3) · 2024doi.org
Genomic signatures of bottleneck and founder effects in dingoes (résumé)
Kumar M., Conroy G., Ogbourne S. M., Cairns K. M., Borburgh L., Subramanian S. · Ecology and Evolution, 13(9), e10525 · 2023doi.org
Conroy G., Lamont R. W., Bridges L., Stephens D., Wardell-Johnson A., Ogbourne S. M. · Scientific Reports, 11, 9503 · 2021doi.org
Miller S. M., Behrendorff L., Allen B. L. et al. · Conservation Genetics, 25(4), 955-971 · 2024doi.org
Genomic consequences of isolation and inbreeding in an island dingo population (résumé)
Leon-Apodaca A. V., Kumar M., del Castillo A. et al. · Genome Biology and Evolution, 16(7) · 2024doi.org
A population viability analysis of K'gari (Fraser Island) wongari (dingoes) (résumé)
Appleby R., Smith B. P., Jones D. N., Conroy G., Behrendorff L. · Australian Mammalogy, 47(1) · 2025doi.org
Smith B. P., Palermo S. G., Watson L. · Australian Zoologist, 41(3), 568-579 · 2021doi.org
Australian Dingo Foundation · 2026dingofoundation.org
Non-seasonal breeding appears dominant with incomplete penetrance in Australian Basenji dogs
Gardner C., Bathgate R., Kinghorn B., Wade C. · Scientific Reports, 15 · 2025doi.org
Breeding Management of Bitches (MSD Veterinary Manual)
Davidson A. P. · Merck & Co. / MSDmsdvetmanual.com
Litter size at birth in purebred dogs — a retrospective study of 224 breeds (résumé)
Borge K. S., Tønnessen R., Nødtvedt A., Indrebø A. · Theriogenology, 75(5), 911-919 · 2011doi.org